
티스토리 뷰
— 탄수화물이 체지방으로 저장되는 생화학적 원리
밥이나 빵을 많이 먹으면 살이 찐다는 말을 자주 듣습니다. 그런데 밥 속의 탄수화물과 뱃살을 이루는 지방은 전혀 다른 물질입니다.
우리 몸은 어떻게 포도당을 지방으로 바꾸는 걸까요?
지난 글에서는 포도당이 해당과정을 거쳐 피루브산으로 분해되고, 그 과정에서 ATP와 NADH가 생성되는 원리를 살펴보았습니다.
그런데 포도당은 에너지를 만드는 데만 사용되는 것은 아닙니다. 필요에 따라 글리코겐으로 저장되기도 하고, 에너지가 충분한 상태에서는 지방산을 새로 만드는 재료가 되기도 합니다.
이 과정을 신생 지방산 합성(De Novo Lipogenesis, DNL)이라고 합니다.
1. 포도당은 먼저 에너지로 사용됩니다
식사를 통해 섭취한 탄수화물은 소화과정을 거쳐 포도당으로 흡수됩니다. 혈액으로 들어온 포도당은 여러 조직에서 에너지원으로 사용됩니다.
세포 안으로 들어온 포도당은 해당과정을 통해 피루브산으로 분해됩니다. 이후 피루브산의 일부는 미토콘드리아로 들어가 아세틸-CoA로 전환되고, TCA 회로와 전자전달계를 거쳐 ATP 생산에 기여합니다.
당장 사용하지 않는 포도당은 간과 근육에 글리코겐 형태로 저장될 수도 있습니다.
그러나 글리코겐 저장량에는 한계가 있습니다. 에너지 섭취가 지속적으로 소비량을 초과하는 상황에서는 지방 합성도 증가할 수 있습니다.
여기서 중요한 점이 있습니다.
탄수화물을 많이 먹었다고 해서 남은 포도당이 곧바로 모두 지방으로 바뀌는 것은 아닙니다.
우리 몸은 포도당의 산화, 글리코겐 저장, 지방 합성 등을 상황에 따라 조절합니다.
2. 포도당이 지방으로 바뀌려면 미토콘드리아를 거쳐야 합니다
포도당으로부터 지방산을 만드는 과정은 해당과정에서 시작됩니다.
포도당 → 피루브산 → 아세틸-CoA
피루브산은 미토콘드리아 안에서 아세틸-CoA로 전환됩니다.
아세틸-CoA는 지방산을 만드는 데 필요한 중요한 탄소 재료입니다. 그런데 문제가 하나 있습니다.
미토콘드리아 안에서 만들어진 아세틸-CoA는 미토콘드리아 내막을 직접 통과하기 어렵습니다.
반면 지방산을 새로 만드는 주요 효소들은 세포질에 있습니다.
그렇다면 아세틸-CoA의 탄소는 어떻게 세포질로 이동할까요?
여기서 등장하는 물질이 바로 시트르산(citrate)입니다. 미토콘드리아 안에서 아세틸-CoA는 옥살로 아세트산과 결합해 시트르산을 형성합니다. 시트르산은 운반체를 통해 세포질로 이동할 수 있습니다. 세포질로 나온 시트르산은 다시 아세틸-CoA와 옥살로아세트산으로 분해됩니다.
이렇게 해서 지방산을 만들 탄소 재료가 세포질에 공급됩니다.
즉, 시트르산은 TCA 회로의 중간체일 뿐 아니라 지방산 합성에 필요한 탄소를 미토콘드리아 밖으로 운반하는 역할도 합니다.
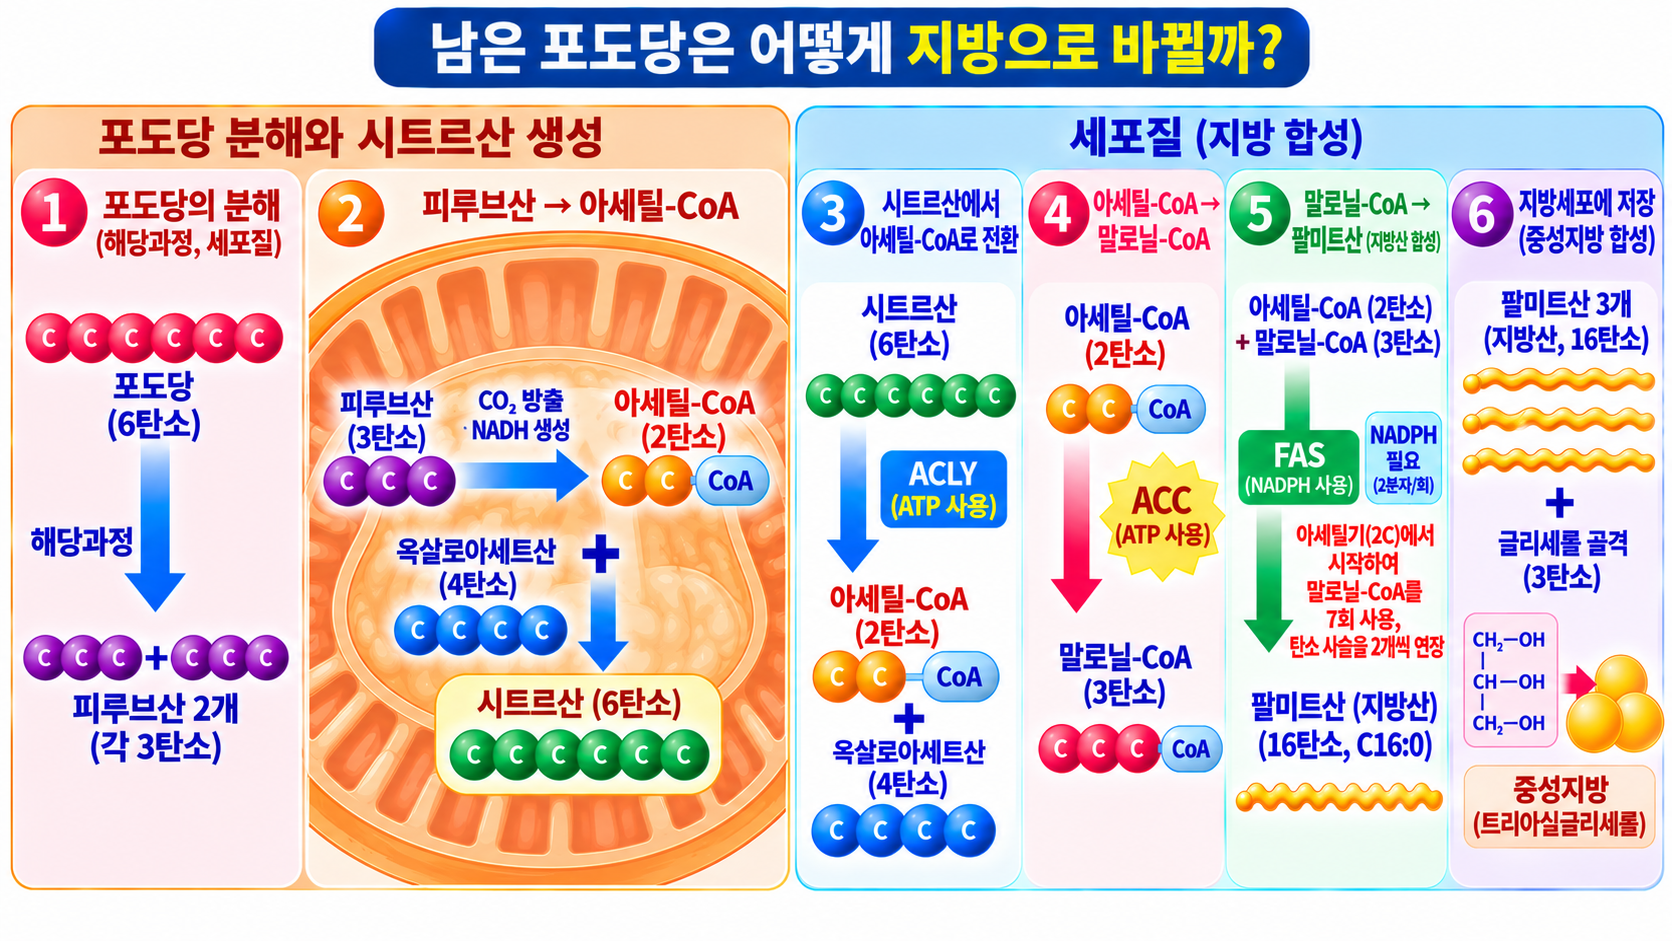
그림. 남은 포도당이 지방으로 바뀌는 과정 포도당은 세포질에서 해당과정을 거치고 미토콘드리아에서 피루브산이 아세틸 CoA로 됩니다.
지방산을 합성하는 효소들은 세포질에 있기 때문에 미토콘드리아에서 만들어진 아세틸 CoA가 시트루산이 된 다음 세포질로 나가
ACLY와 FAS 효소를 이용하여 지방산이 합성됩니다. 긴 지방산 3개와 글리세롤이 결합하여 중성지질이 합성됩니다.
3. 말로닐-CoA는 지방산 합성의 출발 신호입니다
세포질로 나온 아세틸-CoA가 곧바로 긴 지방산이 되는 것은 아닙니다.
먼저 아세틸-CoA는 ACC(아세틸-CoA 카복실화효소)의 작용으로 말로닐-CoA로 전환됩니다. 이 반응에는 ATP가 필요합니다.
말로닐-CoA는 지방산의 탄소 사슬을 길게 만드는 데 사용되는 핵심 재료입니다.
이후 FAS(지방산 합성효소)가 아세틸기와 말로닐기를 이용해 지방산 사슬을 만들어 갑니다.
처음에는 탄소 4개짜리 사슬이 형성됩니다. 그다음 말로닐기에서 탄소 2개씩을 더해 사슬을 점차 연장합니다. 탄소 수는 4개에서 6개, 8개, 10개로 늘어나고, 이 과정이 반복되면 탄소 16개인 팔미트산(palmitic acid, C16:0)이 만들어집니다.
팔미트산은 우리 몸에서 새로 합성되는 대표적인 포화지방산입니다.
여기서 FAS는 여러 작업 기능을 한꺼번에 갖춘 거대한 효소 복합체라고 생각하면 이해하기 쉽습니다.
마치 하나의 생산 공장에서 재료를 받아 가공하고, 탄소 사슬을 조금씩 늘려 완성품을 만드는 것과 비슷합니다.
4. 지방산을 만들 때도 에너지와 NADPH가 필요합니다
지방산 합성에는 탄소 재료만 필요한 것이 아닙니다.
탄소 사슬을 연결하는 과정에서는 에너지가 필요하고, 지방산을 완성하는 환원반응에는 NADPH가 사용됩니다. FAS가 지방산 사슬을 탄소 2개씩 연장할 때마다 NADPH 2 분자가 소비됩니다. 따라서 팔미트산 한 분자를 합성하는 데에는 총 NADPH 14 분자가 필요합니다.
그렇다면 이 NADPH는 어디서 공급될까요?
대표적인 공급 경로가 바로 오탄당 인산경로(Pentose Phosphate Pathway, PPP)입니다. 이전에 살펴본 오탄당 인산경로는 포도당-6-인산을 이용해 NADPH를 생성합니다. NADPH는 글루타치온을 재생하는 항산화 과정에도 필요하지만, 지방산을 새로 만드는 과정에서도 중요한 역할을 합니다.
같은 NADPH가 한쪽에서는 세포를 산화 스트레스로부터 보호하고, 다른 쪽에서는 지방산 합성에 필요한 환원력을 제공하는 것입니다. 다만 지방산 합성에 필요한 NADPH가 모두 오탄당 인산경로에서 나오는 것은 아닙니다. 세포질의 말산효소 등 다른 경로도 NADPH 공급에 기여합니다.
포도당은 지방산의 탄소 재료를 제공할 뿐 아니라, 지방산 합성에 필요한 NADPH의 공급에도 기여할 수 있습니다.
5. 지방을 만드는 동안에는 지방 분해가 억제될까요?
우리 몸은 에너지를 효율적으로 사용하도록 여러 대사경로를 조절합니다.
지방산을 만들면서 동시에 같은 지방산을 분해한다면 불필요한 에너지 소비가 발생할 수 있습니다. 이러한 낭비를 줄이는 데 중요한 역할을 하는 물질이 바로 앞에서 살펴본 말로닐-CoA입니다. 말로닐-CoA는 지방산 합성의 재료이면서 동시에 CPT1이라는 단백질의 작용을 억제합니다. CPT1은 긴 사슬 지방산이 미토콘드리아 안으로 들어가 β-산화를 받는 데 필요한 운반 과정에 관여합니다.
말로닐-CoA 농도가 높아지면 CPT1이 억제되고, 그 결과 지방산의 미토콘드리아 유입과 β-산화가 감소합니다.
쉽게 말하면 다음과 같습니다.
“지방을 만드는 동안에는 지방을 태우는 통로를 일부 닫아 놓는다.”
반대로 운동이나 에너지 부족 상태에서 AMPK가 활성화되면 ACC의 활성이 억제될 수 있습니다. 그러면 말로닐-CoA 농도가 낮아지고 CPT1에 대한 억제가 완화되어 지방산 β-산화가 촉진됩니다.
다만 이 조절은 주로 같은 세포 안에서 불필요한 동시 작동을 줄이는 원리입니다. 우리 몸 전체에서 지방 합성과 지방 분해가 절대로 동시에 일어나지 않는다는 뜻은 아닙니다.
6. 인슐린은 포도당을 지방으로 바꾸는 데 어떤 역할을 할까요?
식사 후 혈당이 상승하면 인슐린 분비가 증가합니다.
인슐린은 세포의 포도당 이용과 저장을 조절할 뿐 아니라, 영양분이 충분한 상태에서 지방산 합성에 유리한 환경을 만드는 데도 관여합니다.
특히 간에서는 인슐린과 포도당 대사 신호가 지방산 합성에 필요한 효소들의 발현을 조절합니다.
여기에는 SREBP-1c와 ChREBP라는 조절 단백질이 관여합니다.
이 이름을 모두 기억할 필요는 없습니다. 이들은 세포가 영양분이 충분하다는 신호를 받았을 때 지방산 합성에 필요한 효소를 더 만들도록 돕는 조절 장치라고 이해하면 됩니다.
그러나 인슐린이 분비된다고 해서 먹은 탄수화물이 모두 지방으로 바뀌는 것은 아닙니다.
실제 지방 합성량은 에너지 섭취량, 글리코겐 상태, 식사의 구성, 대사 상태 등 여러 요인에 따라 달라집니다.
7. 새로 만든 지방산은 어떻게 체지방으로 저장될까요?
FAS에서 만들어진 팔미트산은 필요에 따라 더 긴 지방산으로 연장되거나 불포화지방산으로 변형될 수 있습니다. 이러한 가공은 주로 소포체(ER)에서 일어납니다. 지방산은 글리세롤 골격과 결합해 중성지방(트라이아실글리세롤)을 형성할 수도 있습니다.
간에서 만들어진 중성지방은 간에 저장되거나 VLDL이라는 지단백질에 실려 혈액으로 이동합니다. 이후 지방조직 등에서 저장될 수 있습니다.
그런데 여기서 한 가지 오해를 바로잡아야 합니다.
체지방이 늘어나는 것과 포도당이 직접 지방산으로 바뀌는 것은 같은 뜻이 아닙니다.
우리가 먹은 식이지방도 체지방으로 저장될 수 있습니다. 또한 탄수화물을 많이 섭취하면 탄수화물 산화가 증가하면서 상대적으로 지방 산화가 감소할 수 있습니다. 이 경우 새로 만들어지는 지방산의 양이 많지 않더라도 지방 저장이 증가할 수 있습니다. 따라서 체지방 증가는 단순히 '남은 포도당이 지방으로 변했기 때문'이라고 설명할 수 없습니다.
장기적으로는 에너지 섭취와 소비의 균형, 지방의 저장과 산화, 호르몬과 대사 조절이 함께 작용합니다.
8. 지방 합성이 계속 증가하면 지방간이 될까요?
간은 신생 지방산 합성이 일어나는 중요한 기관입니다. 에너지 과잉 상태가 지속되면 간의 지방산 합성이 증가할 수 있고, 만들어진 지방산은 중성지방으로 전환될 수 있습니다.
그런데 간에 지방이 쌓이는 이유가 신생 지방산 합성 때문만은 아닙니다. 지방조직에서 간으로 유입되는 지방산, 식사를 통해 들어온 지방, 간에서의 지방산 산화와 VLDL 배출 능력도 모두 영향을 미칩니다. 즉, 간에 들어오거나 만들어지는 지방의 양이 간에서 사용하거나 내보내는 양보다 많아지면 지방이 축적될 수 있습니다.
이것이 지방간을 이해하는 중요한 출발점입니다.
마무리 — 포도당은 에너지도 만들고 지방의 재료도 됩니다
포도당은 우리 몸에서 단순히 연료로만 사용되지 않습니다. 필요할 때는 ATP를 생산하고, 일부는 글리코겐으로 저장되며, 영양분과 에너지가 충분한 조건에서는 지방산을 새로 만드는 재료가 됩니다. 이때 아세틸-CoA는 지방산의 탄소 골격을 제공하고, 말로닐-CoA는 사슬 연장에 사용되며, NADPH는 지방산 합성에 필요한 환원력을 공급합니다.
하지만 탄수화물을 먹으면 곧바로 체지방이 된다는 식의 단순한 설명은 정확하지 않습니다. 우리 몸은 포도당과 지방을 끊임없이 사용하고 저장하면서 에너지 균형을 유지합니다.
그렇다면 다음 질문이 생깁니다.
간에서 만들어진 지방이 제대로 사용되거나 배출되지 못하면 어떤 일이 일어날까요?
다음 글에서는 지방간이 생기는 과정과 지방 축적이 염증으로 이어질 수 있는 이유를 살펴보겠습니다.
📖 주요 참고 문헌 (References)
- Sanders FWB, Griffin JL. (2016). De novo lipogenesis in the liver in health and disease: more than just a shunting yard for glucose. (건강과 질병에서 간의 신생 지방산 합성: 단순한 포도당 전환 경로 그 이상). Biol Rev. 91(2):452–468. https://doi.org/10.1111/brv.12178
- Ameer F, Scandiuzzi L, Hasnain S, et al. (2014). De novo lipogenesis in health and disease. (건강과 질병에서의 신생 지방산 합성). Metabol. 63(7):895–902. https://doi.org/10.1016/j.metabol.2014.04.003
- Cross E, Dearlove DJ, Hodson L. (2023). Nutritional regulation of hepatic de novo lipogenesis in humans. (사람에서 간의 신생 지방산 합성에 대한 영양학적 조절). Curr Opin Clin Nutr Metab Care. 26(2):65–71. https://doi.org/10.1097/MCO.0000000000000914