
티스토리 뷰
밥을 먹으면 힘이 난다고 합니다. 그런데 밥 속의 탄수화물이 어떻게 근육을 움직이고 뇌를 활동하게 만드는 에너지로 바뀌는 걸까요?
우리가 먹은 탄수화물은 소화되어 포도당으로 흡수됩니다. 포도당은 세포 안에서 여러 단계를 거쳐 분해되면서 에너지를 만들어 냅니다.
그 첫 번째 과정이 바로 해당과정(Glycolysis)입니다.
그런데 여기에는 흥미로운 사실이 숨어 있습니다. 세포는 포도당에서 에너지를 얻기 위해 오히려 ATP를 먼저 사용합니다. 그리고 달리기나 계단 오르기처럼 근육이 갑자기 많은 에너지를 필요로 할 때는 젖산 생성도 증가합니다.
왜 세포는 에너지를 얻기 위해 에너지를 먼저 투자할까요? 또 근육은 왜 피루브산을 젖산으로 바꾸는 걸까요?
그 비밀은 해당과정과 NAD⁺의 재생에 있습니다.
1. 포도당 한 분자를 두 개로 나누는 이유
해당과정은 세포질에서 일어나는 일련의 효소 반응입니다.
탄소 6개로 이루어진 포도당 한 분자가 여러 단계를 거쳐 탄소 3개로 이루어진 피루브산 두 분자로 바뀝니다.
포도당(6 탄소) → 피루브산(3 탄소) × 2
이 과정은 미토콘드리아 밖의 세포질에서 진행되며, 산소를 직접 소비하지 않습니다. 그렇다면 포도당을 두 개의 작은 분자로 나누면서 세포는 무엇을 얻을까요? 바로 ATP와 NADH입니다.
ATP는 세포가 즉시 사용할 수 있는 에너지 전달 물질이고, NADH는 전자를 운반하는 역할을 합니다.
그런데 ATP를 얻는 과정에는 조금 이상한 점이 있습니다.
2. ATP를 만들기 위해 ATP부터 쓴다고?
우리가 돈을 벌기 위해 먼저 투자하는 것처럼, 해당과정도 ATP를 먼저 사용합니다. 해당과정의 앞부분에서 세포는 ATP 2개를 투자합니다. 포도당을 인산화하고 이후 반응이 진행될 수 있도록 준비하는 과정입니다.
그다음 포도당에서 유래한 두 개의 3 탄소 분자가 대사 되면서ATP 4개가 생성됩니다. 따라서 최종적으로 남는 ATP는 다음과 같습니다.
- 투자한 ATP: 2개
- 생산한 ATP: 4개
- 순생산 ATP: 2개
포도당 한 분자에서 ATP를 겨우 2개 얻는다니, 너무 적다고 생각할 수도 있습니다. 하지만 해당과정의 장점은 따로 있습니다.
미토콘드리아의 전자전달계를 거치지 않고도 ATP를 직접 만들 수 있다는 점입니다. 이를 기질 수준 인산화라고 합니다.
특히 근육이 갑자기 강하게 수축할 때(무산소 운동 등) 해당과정은 빠른 ATP 공급에 중요한 역할을 합니다.
물론 세포의 ATP 공급은 해당과정 하나에만 의존하지 않습니다. 인산크레아틴 시스템과 미토콘드리아의 산화적 인산화도 함께 작동합니다.
3. ATP만 만드는 것이 아니다 — NADH의 탄생
해당과정에서 주목해야 할 또 하나의 물질은 NADH입니다. 포도당이 분해되는 동안 일부 중간대사산물이 산화되고, 그 과정에서 나온 전자를 NAD⁺가 받아 NADH로 바뀝니다.
NAD⁺ + 2e⁻ + H⁺ → NADH
NAD⁺는 전자 2개와 수소 이온 1개를 받아 NADH로 바뀝니다. 이렇게 만들어진 NADH는 전자를 운반하는 역할을 합니다.
포도당 한 분자가 해당과정을 거치면 NADH 2 분자가 생성됩니다.
이전에 설명했던 TCA 회로에서도 NADH가 만들어졌지요. 이렇게 생성된 NADH의 전자는 궁극적으로 미토콘드리아의 전자전달계에서 ATP 생산에 이용될 수 있습니다. 다만 세포질에서 만들어진 NADH 자체가 미토콘드리아 내막을 그대로 통과하는 것은 아닙니다. 말산-아스파르트산 셔틀이나 글리세롤-3-인산 셔틀 등을 통해 전자가 전달됩니다.
그런데 여기서 새로운 문제가 생깁니다.
NAD⁺가 계속 NADH로 바뀌기만 한다면 어떻게 될까요?
세포 안에서 사용할 수 있는 NAD⁺가 부족해지고, 결국 해당과정도 원활하게 진행될 수 없을 것입니다. 따라서 NADH를 다시 NAD⁺로 되돌리는 과정이 반드시 필요합니다.
바로 이 지점에서 젖산이 등장합니다.
4. 근육은 왜 피루브산을 젖산으로 바꿀까?
계단을 빠르게 오르거나 전력질주를 하면 근육은 짧은 시간에 많은 ATP를 필요로 합니다. 이때 해당과정의 속도가 증가하면서 피루브산과 NADH도 빠르게 만들어집니다.
그런데 해당과정이 계속 진행되려면 NAD⁺가 재생되어야 합니다. 이를 돕는 것이 젖산탈수소효소(LDH)입니다.
피루브산 + NADH + H⁺ ⇄ 젖산 + NAD⁺
피루브산이 젖산으로 전환되는 동안 NADH는 NAD⁺로 산화됩니다. 이렇게 재생된 NAD⁺는 다시 해당과정에 사용됩니다. 즉, 젖산 생성은 해당과정이 계속 ATP를 공급할 수 있도록 돕는 중요한 반응입니다.
그렇다면 젖산은 산소가 부족할 때만 만들어질까요? 그렇지 않습니다.
산소가 충분한 상태에서도 젖산은 계속 생성됩니다. 다만 고강도 운동처럼 해당과정의 속도가 빨라지면 젖산 생성이 증가하고, 생성량이 이용·제거량을 초과할 경우 젖산이 축적됩니다.
따라서 젖산을 단순히 산소 부족의 결과나 피로를 일으키는 노폐물로 생각해서는 안 됩니다.
젖산은 심장과 다른 근육 등에서 에너지원으로 이용될 수 있고, 간에서는 다시 포도당을 만드는 재료로도 사용됩니다.
이전에 소개했던 코리 회로(Cori cycle)가 바로 젖산과 포도당을 연결하는 대표적인 경로입니다.
참고로 운동 다음 날이나 이틀 뒤에 나타나는 지연성 근육통은 젖산이 근육에 남아 있어서 생기는 것이 아닙니다. 주로 익숙하지 않은 운동에 따른 근육의 미세손상과 그에 뒤따르는 반응이 관련됩니다.
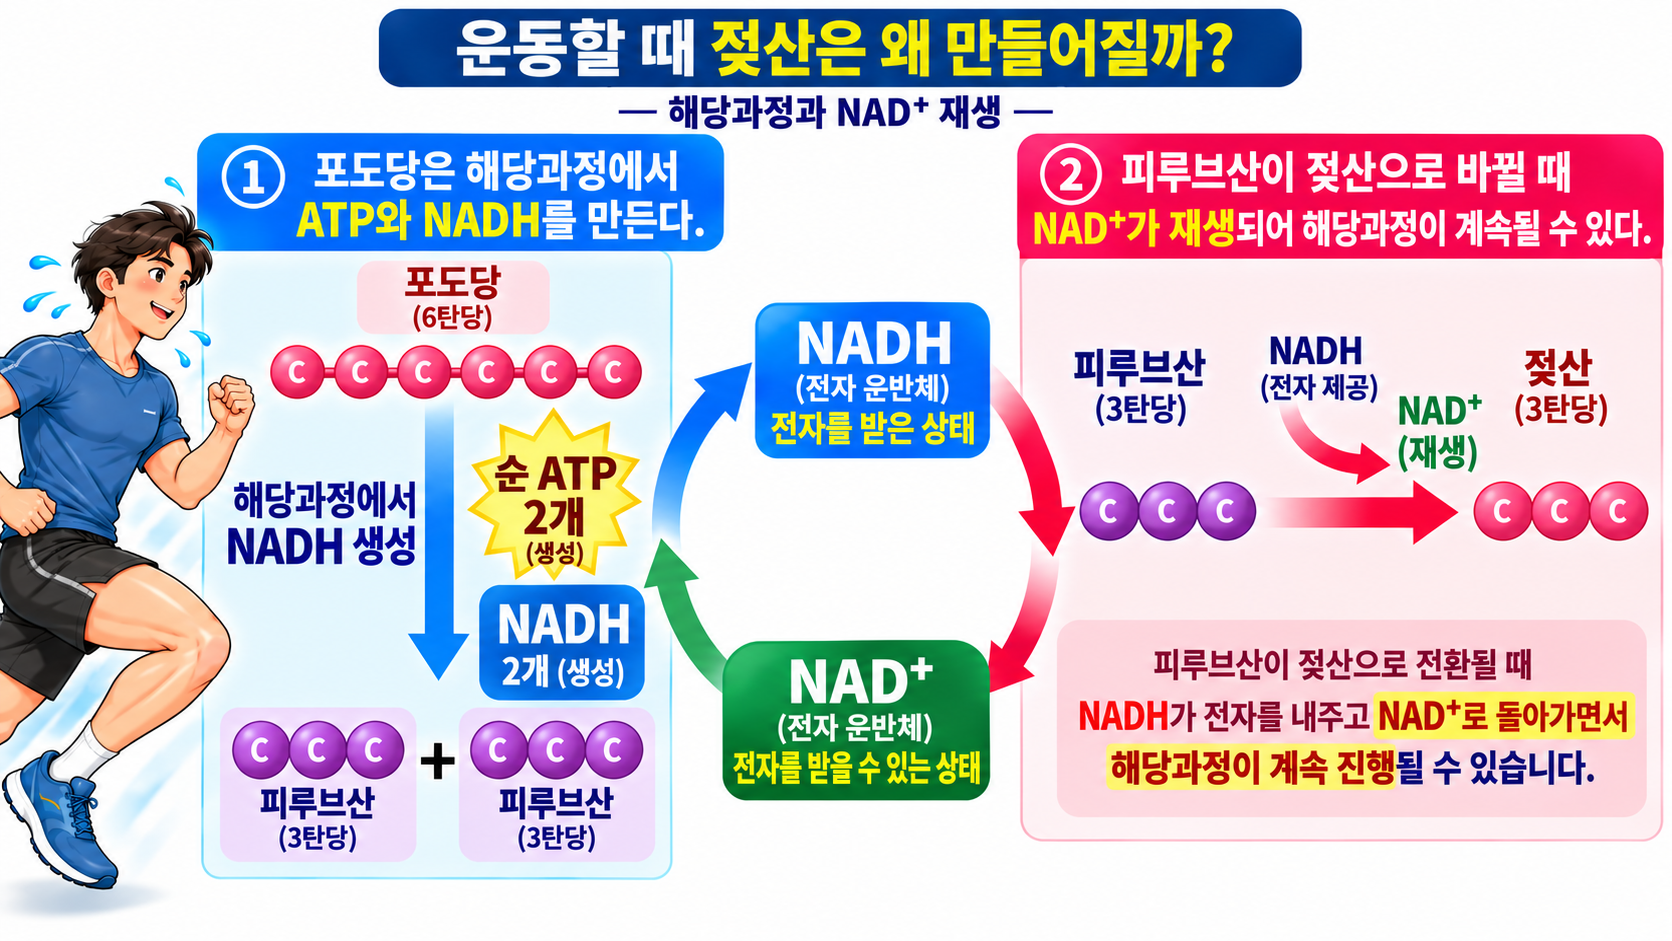
그림. 해당과정과 젖산 생성의 관계 포도당은 해당과정에서 ATP와 NADH를 생성합니다. 피루브산이 젖산으로 전환될 때
NADH는 NAD⁺로 돌아가며, 재생된 NAD⁺는 해당과정이 계속 진행되도록 돕습니다.
5. 젖산으로 가지 않은 피루브산은 어디로 갈까?
해당과정의 최종 산물인 피루브산에는 다른 중요한 행선지도 있습니다.
피루브산은 미토콘드리아로 들어가 피루브산 탈수소효소 복합체에 의해 아세틸-CoA로 전환될 수 있습니다. 이 과정에서도 NADH가 생성됩니다. 이후 아세틸-CoA는 TCA 회로에 들어가고, 여기서 만들어진 NADH와 FADH₂는 전자전달계를 통한 ATP 생산에 기여합니다.
정리하면 포도당의 에너지 생산은 다음과 같이 연결됩니다.
포도당 → 해당과정 → 피루브산 → 아세틸-CoA → TCA 회로 → 전자전달계
한편 피루브산과 젖산 사이의 전환은 NAD⁺와 NADH의 균형을 조절하는 데 도움을 줍니다. 이 두 경로는 서로 완전히 배타적인 것이 아닙니다. 세포의 에너지 요구량과 대사 상태에 따라 동시에 진행될 수 있습니다.
6. 다이어트 중에도 포도당이 중요한 이유
다이어트를 시작하면 밥이나 빵부터 줄이는 경우가 많습니다. 그러다 보면 포도당을 마치 체지방을 늘리는 물질로만 생각하기 쉽습니다.
그러나 포도당은 우리 몸에 꼭 필요한 대사 물질입니다. 뇌는 일반적인 식사 상태에서 포도당을 주요 에너지원으로 사용합니다. 적혈구는 미토콘드리아가 없어 포도당의 해당과정에 의존해 ATP를 생산합니다.
또한 포도당-6-인산은 오탄당 인산경로로 들어가 NADPH를 만드는 데 이용됩니다. NADPH는 글루타치온 재생과 같은 항산화 방어에도 중요합니다.
물론 탄수화물 섭취가 부족하면 간과 신장은 당신생을 통해 포도당을 만들 수 있습니다. 하지만 이 과정에도 에너지가 필요합니다.
따라서 포도당이 필요하다는 사실이 탄수화물을 무조건 많이 먹어야 한다는 뜻은 아니며, 반대로 탄수화물을 무조건 피해야 한다는 뜻도 아닙니다.
중요한 것은 '우리 몸이 포도당을 어떻게 사용하고 조절하느냐'입니다.
마무리 — 포도당은 단순한 당이 아니라 에너지 대사의 출발점
포도당 한 분자는 해당과정을 거쳐 피루브산 두 분자로 나뉘면서 순 ATP 2개와 NADH 2개를 생성합니다. 근육에서 빠른 ATP 공급이 필요할 때는 젖산 생성이 NAD⁺ 재생을 도와 해당과정이 계속 진행되도록 합니다.
한편 피루브산은 미토콘드리아에서 아세틸-CoA로 전환되어 TCA 회로와 전자전달계로 이어질 수 있습니다.
그렇다면 에너지가 충분한 상태에서 포도당이 계속 공급되면 어떻게 될까요?
포도당에서 유래한 탄소는 에너지 생산뿐 아니라 지방산 합성에도 이용될 수 있습니다.
다음 글에서는 「남은 포도당은 어떻게 지방이 될까?」를 통해 포도당에서 지방산이 만들어지는 '신생 지방합성 과정'을 살펴보겠습니다.
📖 주요 참고 문헌 (References)
- Brooks GA. (2018). The Science and Translation of Lactate Shuttle Theory. Cell Metabol., 27(4), 757–785. DOI: 10.1016/j.cmet.2018.03.008
- Gladden LB. (2004). Lactate metabolism: a new paradigm for the third millennium. J. Physiol., 558(1), 5–30. DOI: 10.1113/jphysiol.2003.058701
- Adeva-Andany M et al. (2014). Glycogen metabolism in humans. BBA Clinical, 5, 85–100. DOI: 10.1016/j.bbacli.2016.02.001